
概要
タンパク質は一般に、アミノ酸配列によって定まる1つの安定な天然構造へ折りたたまれ、その構造によって機能を発揮すると考えられてきた。しかし近年、この見方に新たな視点を与える例として、「変身タンパク質」が注目されている。変身タンパク質とは、単一のアミノ酸配列が、トポロジーレベルで異なる2つの天然構造を取り、それらの構造間を相互変換できるタンパク質である。変身タンパク質では、温度、塩濃度、リガンド結合、タンパク質間相互作用などに応じて立体構造が切り替わり、それに伴って機能の種類や活性のON/OFFといった機能状態が変化する。本総説では、変身タンパク質の発見と代表例を概説した後、人工的な設計、網羅的な探索・予測手法、構造変換の解析、進化との関わりを整理する。さらに、我々が設計したシーソータンパク質も紹介する。シーソータンパク質は、蛍光を示すGFP型と酵素活性を示すDHFR型という異なる機能を持つ2つの立体構造を相互排他的に取る。両構造の存在比は塩濃度やpHに応じて可逆的に変化する。また、高速原子間力顕微鏡観察によって、その構造変換の過程を直接捉えることにも成功した。変身タンパク質の研究は、タンパク質の配列と立体構造の関係を再考するだけでなく、進化の過程で新しい立体構造が生まれる仕組みや、1つの配列が2つの構造を持ち、機能状態を切り替えることの意味を問う研究へと広がっている。
1. はじめに
1.1 アンフィンセンのドグマ
一般に、タンパク質はアミノ酸配列によって定まる特定の立体構造へ折りたたまれ、その構造によって機能を発揮する分子である。この「1つの配列 → 1つの構造」という見方は、アンフィンセンのドグマとして蛋白質科学の中心的な考え方となってきた(図1A)(1)。このドグマが広く受け入れられてきた背景には、構造決定技術の性質も関係している (2)。例えば、多くの構造解析に利用されてきたX線結晶構造解析は規則的な結晶を要求する。そのため、構造解析によって可視化されてきたタンパク質の多くは、単一の天然構造を持つものとして理解されてきた。しかし実際には、「1つの配列 → 1つの構造」という対応から外れる例もさまざまな階層で見つかっている。
1.2 「1配列1構造」の例外
まず、短い配列のレベルでは、同じアミノ酸配列が異なる二次構造を取る例が知られている。pHや温度などの環境によって二次構造が変化する「スイッチペプチド」(3–8) や、同じアミノ酸配列が組み込まれる周辺アミノ酸配列(文脈)によって異なる二次構造を形成する「カメレオン配列」がその代表例である (9–11)。
ドメイン全体のレベルでも、単一の天然構造という見方に収まらないタンパク質が存在する。アミロイドは、天然構造から別の安定状態へ不可逆に遷移する例として知られている (12)。また、天然変性タンパク質は安定な立体構造をそもそも取らない例としてよく知られる(図1C)(12, 13)。
これらに対して、本総説の対象である変身タンパク質(metamorphic protein)は、トポロジーレベルで異なる2つの天然構造を持ち、それらの間で可逆的に構造変換するタンパク質である(図1B)。変身タンパク質は、「1つの配列 → 1つの構造」という古典的な対応から外れる存在であり、配列、構造、機能の関係を考え直すうえで重要な研究対象となっている。
本総説では、変身タンパク質の発見と代表例(2章)、設計(3章)、探索と予測(4章)、構造変換(5章)、進化(6章)と今後の展望(7章)を論じる。
2. 変身タンパク質の発見と代表例
2.1 変身タンパク質の発見
変身タンパク質の最初の例は、ヒトのケモカインタンパク質XCL1(Human lymphotactin)であり、2001–2002年に報告された。VolkmanらはNMRでXCL1の構造決定を試みた際、生理的条件下でNMRスペクトルに、通常の単一構造タンパク質で期待される数の約2倍のピークが現れることに気付いた。続く解析により、XCL1がケモカインに保存された構造に加えて、全βシートからなる代替構造を取ることが示された(図2A)(14, 15)。その後、XCL1は生理的条件下ではケモカイン構造と代替構造が同程度の比率で共存することが明らかになった (16)。さらに、低温・高塩濃度ではケモカイン構造が優勢になる一方、高温・低塩濃度では代替構造が優勢となり、両構造は約1 s-1の速度で相互変換していることが明らかになった (17)。また、ケモカイン構造は単量体としてケモカイン受容体XCR1に結合する一方、代替構造は二量体としてグリコサミノグリカンに結合し、立体構造に応じて機能が変化することも示された (16)。
このような「単一のアミノ酸配列から2つの天然構造が生じ、それらの間を可逆的に変換できる」性質を持つタンパク質を、Murzinはmetamorphic protein(変身タンパク質)と命名した (18)。
2.2 代表的な天然の変身タンパク質
XCL1の発見以降、いくつかの変身タンパク質が報告されてきた。代表例として転写因子RfaHと概日時計タンパク質KaiBがある(図2)。
RfaHは大腸菌の転写因子で、広く保存されたNusGファミリーに属する (19)。一般的なNusGはN末端ドメイン(NTD)がRNAポリメラーゼ(RNAP)に結合して転写の一時停止を抑制する。C末端ドメイン(CTD)はβ型(β-roll CTD)を形成し、リボソームと相互作用することによって翻訳を誘導する機能を持つ (20)。これに対してRfaHはNusGと共通のNTDを持つものの、そのCTDはα型(αヘアピンCTD)を取り、NTDと相互作用してRNAP結合面をマスクした構造を形成する (21)。しかし、RfaHが特定のDNA配列で転写が停止したRNAPに結合すると、NTD–CTD界面が不安定化し、CTDはα型からβ型へとリフォールディングする(図2B)(22, 23)。その結果、RfaHはRNAPだけでなくリボソームとも結合し、転写と翻訳を共役させる (22, 23)。このような転写と翻訳のカップリングによってリボソーム結合部位を持たない長いオペロンの発現を促進する因子として機能している (22)。これらのオペロンでは、転写途中でRNAポリメラーゼが停止しやすいため、RfaHは転写伸長を助けることで、下流遺伝子まで転写を継続させる役割を担っている (24)。
KaiBはシアノバクテリアの概日時計を構成する3つのタンパク質(KaiA・KaiB・KaiC)のひとつで、2つの立体構造を可逆的に切り替える(図2C)(25–27)。一つはKaiB固有型(ground-state KaiB)で、βαββααβ構造を取り、四量体を形成する。もう一つはチオレドキシン様型(fold-switched KaiB)で、βαβαββα構造を取る単量体であり、KaiCに結合する。両者はC末端側の約半分で二次構造が組み変わっており、この構造変換にはサブユニットの解離・会合が伴う。この構造変換は、KaiABCによる概日時計の周期形成と密接に関係している。KaiCのリン酸化と脱リン酸化が約24時間周期で進行し、その周期的な状態変化が概日時計の中心となる。単量体型KaiBはKaiCに結合し、KaiCのリン酸化を促進するKaiAを隔離することでKaiCの脱リン酸化を促進する (26–28)。KaiBの構造変換を抑制した変異体ではシアノバクテリアの概日リズムが消失することから、KaiBの構造変換は24時間周期を駆動する因子の1つと報告されている (26)。
2.3 変身タンパク質が立体構造を切り替える条件
変身タンパク質の構造変換を引き起こす条件はタンパク質ごとに異なる。XCL1では温度や塩濃度の変化が構造変換を引き起こす (29)。一方、RfaHでは特定のDNA配列で停止したRNAPへの結合が、KaiBではKaiCとの結合が構造変換を引き起こす (29)。このほかにも、ヒトの塩化物イオンチャネルCLIC1は酸化還元電位に応じて可溶性単量体と膜挿入型二量体が切り替わる (30)。また、インフルエンザヘマグルチニンではpH変動が構造変換の条件として報告されている (31)。
ただし、ここで挙げた条件は、これまでに偶然発見された変身タンパク質で観察されたものに限られ、構造変換を引き起こす要因が網羅的に検討された結果ではない。未知の刺激によって立体構造が切り替わる変身タンパク質が存在する可能性は十分にある。
3. 変身タンパク質の設計
タンパク質設計では通常、目的の立体構造が単一の安定状態となるように配列を最適化する。一方、変身タンパク質の設計では、1つの配列に2つの立体構造を共存させ、条件に応じて平衡が変化するように設計する必要がある。この課題に対して、複数の方向から設計研究が進められてきた。
3.1 2つのタンパク質の配列を一致させる設計
異なる立体構造を取るタンパク質同士の配列を近づける設計は、1994年にRoseとCreamerが提起したパラケルススの挑戦に始まる (32)。この挑戦は、2つの天然タンパク質の間で、配列の半分以下の置換によって一方の構造を他方の構造へ切り替えられるかを問うものであった。この問いに対する研究として、DalalらはProtein GのIgG結合ドメインと50%の配列同一性を保ちながら、Ropタンパク質の全α構造を取るタンパク質(Janus)を設計した (33)。Janus自身は単一の構造に折りたたまれるが、よく似た配列が異なる立体構造を取りうることを示した点で重要である。
その後、OrbanらはProtein Gの2つのドメインであるGAとGBを出発点として、配列を段階的に近づけることで、1残基の違いで異なる構造を保つタンパク質対を作製した (34–37)。彼らは、この方法を同一配列で2つの構造を取る設計へ拡張し、GA配列をリボソームタンパク質由来(S6)のα/β-plait構造を取る配列中に組み込むことで、温度に応じて2つの構造の存在比が変化する変身タンパク質(Sa1V90T)を報告した(図3A)(38)。Sa1V90Tは低温では3ヘリックスバンドル構造、高温ではα/β-plait構造が優勢となる。この研究は、2種類のタンパク質のアミノ酸配列を近づけることで、最終的に変身タンパク質を設計できることを示した。
3.2 2つのタンパク質を入れ子にする設計
1つの配列に2つの構造を持たせる別の方法として、あるタンパク質の内部に別のタンパク質を挿入する設計がある。この設計では、一方の立体構造が形成されると、もう一方の構造は立体障害によって形成できない。そのため、2つのタンパク質の構造は同時には成立せず、条件に応じてどちらか一方が形成される。
Lohらは、アロステリックスイッチの設計を目的として、この原理を利用した人工タンパク質を開発した (39–43)。例えば、リボヌクレアーゼBarnaseの内部にユビキチンを挿入したBUでは温度変化に、DNA結合タンパク質GCN4を挿入した設計ではDNA結合に応じて、2つの状態が切り替わることが示唆された(図3B)(39, 40)。これらの設計は、2つの構造を物理的に両立できないように配置することで、構造間の排他的な切り替えが実現可能であることを示した。
3.3 ドメインの一部を重複させる設計
この方法では、ドメインの一部を重複させ、2つの重複領域が同じ相補領域を取り合うように設計する。重複領域が一方の相補領域を取り込むと、もう一方の重複領域は利用できない。そのため、2つの重複領域のうちどちらが相補領域を取り込むかによって、2つの立体構造が実現する。
Lohらは、Calbindin D9kのC末端領域を複製してN末端側に融合することで、カルシウム結合状態に応じて平衡が変化するセンサーを設計した (44)。その後、類似した原理を用いた設計が異なる目的で独立に報告されている。例えば、Boxerらは、GFPの一部配列を重複させることで、外部刺激に応じて異なる蛍光状態間を切り替えるセンサーを設計した (45)。また、Clarkらは共翻訳的フォールディングを解析するため、蛍光タンパク質の一部を重複させたタンパク質(YKB)を設計し、翻訳速度によって2つの蛍光状態の比率が変化することを示した(図3C)(46)。これらの研究は出発点こそ異なるものの、いずれも「重複した2つの領域が同じ相補領域を取り合う」という共通した設計原理として整理できる。
3.4 計算による2つの立体構造の設計
Rosettaをはじめとするタンパク質設計の発展により、単一配列に2つの天然構造を持たせる試みも進められてきた。初期の例では、Zinc fingerモチーフを既存のタンパク質骨格へ導入することで、金属イオン結合に応じて立体構造が切り替わるタンパク質が設計された (47–49)。特に、Kuhlmanらは、pHや金属イオンに応じてZinc finger構造とコイルドコイル構造を可逆的に切り替えるタンパク質(Sw2)を設計した (49)。この研究は、単一配列を2つの目的構造に同時に適合させる計算設計が可能であることを示した。
さらに近年では、デノボデザインも試みられている。Bakerらは、カルシウムイオンの結合に応じて短いヘリックスバンドル型と長いヘリックスバンドル型を切り替えるタンパク質(XAA_GVDQ)を設計した(図3D)(50)。これらの研究は、既存タンパク質の改変だけにとどまらず、デノボデザインによって2つの天然構造を持つタンパク質も設計できることを示している。
3.5 シーソータンパク質 — 2つの「機能」を両立する設計
ここまで述べた設計は、1つの配列に2つの立体構造を持たせることを主な目的としていた。一方、天然の変身タンパク質では、構造変換が単なる形の変化ではなく、2つの構造がそれぞれ異なる機能に結びつく場合がある。したがって、2つの立体構造だけでなく、2つの異なる機能を同一配列に両立させることが、変身タンパク質設計の次の課題となる。この課題に対して、我々は、シーソータンパク質(Seesaw protein, SSP)を設計した (51)。シーソータンパク質は、蛍光タンパク質(green fluorescent protein, GFP)と大腸菌ジヒドロ葉酸還元酵素(DHFR)のそれぞれの末端配列の一部が重なるように融合したタンパク質である(図4A、B)。重ね合わせた領域(重複領域)はGFPまたはDHFR由来の配列からなり、GFP領域、DHFR領域のどちらとも相互作用できるが、同時に両方に組み込まれることはできない。そのため、重複領域がGFP側へ取り込まれると蛍光性を持つGFP型が形成され、DHFR側へ取り込まれると酵素活性を持つDHFR型が形成される。
実際、精製したシーソータンパク質は、GFPの蛍光とDHFRの酵素活性の両方を示し、限定的タンパク質分解および高速原子間力顕微鏡(high-speed atomic force microscopy, HS-AFM)による観察により、GFP型(1ドメイン構造)とDHFR型(2ドメイン構造)の両方の立体構造が共存することが確認された(図4C)。また、リガンド(DHFR阻害剤メトトレキサート)の結合や緩衝液のpH・塩濃度によって可逆的に両構造間を行き来することも実証された。シーソータンパク質は、(ⅰ)蛍光と酵素活性という2つの異なる機能を持つ点、(ⅱ)HS-AFMにより構造変換そのものを直接観察できた点(図4D、5章)で、それまでの変身タンパク質設計をさらに発展させた例と言える。
3.6 変身タンパク質設計の現状と限界
このように、異なるトポロジーを持つ2つの構造を単一の配列で実現するため、さまざまな設計原理が開発されてきた。一方、2つの構造を実現する仕組みは、天然タンパク質と設計タンパク質で異なる。XCL1、RfaH、KaiBなどの天然の変身タンパク質では、同じ配列領域が大きく組み替わり、異なる折りたたみ構造を形成する。これに対して、本章で紹介した人工設計の多くでは、入れ子構造や重複領域の競合などによって2つの構造を排他的に形成するため、一方の状態では一部の配列領域が構造形成に参加しない。天然にみられるように、同じ配列領域が2つの異なる折りたたみ構造を形成する変身タンパク質を、汎用的に設計できる手法を確立することは今後の課題の一つである。
4. 変身タンパク質の普遍性と予測
XCL1、RfaH、KaiBをはじめとする天然の変身タンパク質の発見により、変身タンパク質は特定のタンパク質ファミリーに限られない可能性が示された。一方で、新規の変身タンパク質をどのように発見するかは現在に至るまで大きな課題である。近年では、二次構造予測、構造予測モデル、進化情報解析などを利用して、変身タンパク質を網羅的に探索・予測する試みが進められている。
4.1 変身タンパク質の普遍性
変身タンパク質は長らく稀な例外と考えられてきた。しかし、PDBを網羅的に探索した研究から、多数の変身タンパク質候補が同定されている (52)。この研究では、まずPDBに登録されたタンパク質から、配列同一性が90%以上でありながら二次構造が異なるタンパク質の組を探索した。得られたタンパク質対について文献を調査し、構造の違いがアミノ酸変異によるものではなく、構造変換が起こると推定できる条件が報告されているものを選別した。その結果、PDBに2つの立体構造が登録されている変身タンパク質候補が96個得られた。これらの候補は古細菌・細菌・ウイルス・真核生物に広く分布し、多様な機能を担っていたことが明らかになった。
一方、多くのタンパク質では1つの構造しか解かれていないため、変身タンパク質はさらに多く見逃されていると考えられる。そこで同研究では、二次構造予測や、フォールディングの独立性といった特徴(詳細は4.2節)を手がかりに、1つの構造しか解かれていないタンパク質からも変身タンパク質を予測することで、PDBに登録されたタンパク質の最大4%が変身タンパク質でありうると見積もった。ただし、これらの特徴による予測には偽陽性・偽陰性が多く含まれるため、この4%は誤差の大きい概算である。それでも、両構造がPDBに存在する96個のタンパク質は一部にすぎず、未発見のものを含めればPDBに登録されたタンパク質全体の数%に及ぶ可能性が示された。
4.2 配列情報に基づく予測
変身タンパク質では、同じ配列領域が異なる二次構造を取りうる。そのため、通常の二次構造予測プログラムが安定した予測を返さない場合がある。この性質に着目し、二次構造予測の不一致そのものを変身タンパク質のシグナルとする手法が開発されてきた。例えば、実験構造と予測結果の不一致や、構造変換領域を単独で予測した場合と全長タンパク質中で予測した場合の不一致、類似配列間での予測結果の不一致を利用することで、変身タンパク質を推定する手法が提案されている (52–55)。また、立体構造が変化するドメインが、他のドメインから独立して折りたたまれる傾向を組み合わせることで、既知の変身タンパク質を一定精度で検出できることも示されている (52)。
これらの手法では、配列情報のみから比較的高速に予測できるものの、偽陽性率が高く、既知の変身タンパク質の一部しか検出できないという限界もある。例えば、初期の網羅探索では偽陽性29%、偽陰性32%が報告されている (52)。したがって、二次構造予測の不一致は、それだけで変身タンパク質であることを示す決定的な証拠ではない。むしろ、「変身タンパク質らしさ」を示す弱いシグナル、あるいは初期スクリーニングの指標として扱うのが適切である。
4.3 構造予測モデルの応用
AlphaFold2(AF2)は、配列から立体構造を高精度に予測することに成功し、近年のタンパク質研究を大きく変えた (56)。しかしAF2は、基本的には単一の立体構造を予測するように設計されているため、変身タンパク質に対しては一方の構造しか予測できない場合が多い (57)。既知の変身タンパク質を対象とした解析では、90%以上の変身タンパク質で一方の構造しか再現できず、場合によっては主要構造すら正しく予測できないことが報告されている (57)。
この問題に対して、MSA(multiple sequence alignment)の与え方を操作することで、AF2から複数の構造状態を引き出す試みが行われている。AF-clusterは、MSAを配列類似性に基づいて複数のクラスターに分け、それぞれを独立にAF2へ入力する手法である (58)。これにより、異なる立体構造が予測される場合がある。一方で、このようなクラスタリング手法については、「AF2が真に構造多様性を予測しているのか」、あるいは「学習済み構造を参照しているだけなのか」という議論がある (59)。特に、AF-clusterの成功例の一部は、AF2の訓練データに含まれる構造の記憶に依存している可能性が指摘されている (59)。また、MSAをクラスタリングする操作そのものの妥当性についても議論が続いている (60)。
これに対して、MSAをランダムにサブサンプリングすることで複数構造を引き出すCF-randomも提案されている (61)。こちらは配列クラスタリングを用いず、MSAの情報量を変えることで異なる予測構造を得る手法である。既知の変身タンパク質の約35%で両構造の予測に成功しており、従来法を上回る性能が報告されている (61)。ただし、こちらも既知の変身タンパク質を対象とした評価が中心であり、未知タンパク質への一般性はまだ十分に検証されていない。
4.4 進化情報の利用
変身タンパク質の2つの立体構造がどちらも進化的に保存されている場合、MSAにはそれぞれの構造に対応した共進化シグナルが含まれる。この考え方に基づき、進化情報から変身タンパク質を予測する試みも行われている。
共進化シグナルを抽出する手法としてAlternative Contact Enhancement(ACE)が開発された。ACEは、配列数の多いMSAと少ないMSAを比較することで、通常の解析では埋もれやすい代替構造の共進化シグナルを抽出する (62)。ACEは偽陽性率が極めて低い一方で、検出できる変身タンパク質は限定的であり、既知の変身タンパク質の約20%しか検出できない (62)。このため、広く候補を拾い上げるスクリーニングには向かないが、候補の信頼性を高める補助的指標として有用である。
4.5 網羅探索の現状と限界
現在の予測手法は、既知の変身タンパク質や特定ファミリーに対しては一定の成功を収めている。例えばNusGスーパーファミリーでは、約24%が変身タンパク質であると予測され、その一部は円二色性やNMRによって実験的にも確認されている (63)。この結果は、変身性が特定ファミリー内で広く保存されている可能性を示唆している。
さらに近年では、プロテオーム規模での探索も始まっている。大腸菌タンパク質を対象とした解析では、複数の予測法を組み合わせることで数十個の変身タンパク質候補が提案されている (61)。しかし、これらの候補の大部分は未検証であり、候補のうち実際に変身タンパク質であるものがどの程度含まれるかはまだ明らかではない。
このように、変身タンパク質の探索と予測は、二次構造予測、構造予測モデル、進化情報解析など複数の方向から進められてきた。ただし、現在の手法の多くは既知例の特徴に依存しており、未知のタンパク質ファミリーから新規の変身タンパク質を網羅的に発見できる段階には、まだ至っていない。
5. 構造変換の解析
変身タンパク質の2つの天然構造は、どのような経路で相互変換されるのか。この問いは、変身タンパク質の機能制御や設計原理を理解するうえで重要である。しかし、構造変換はμs–s、場合によってはそれ以上の幅広い時間スケールで起こるため、構造変換全体を直接観察することは容易ではない。現在は、分子動力学計算、NMR、HS-AFMなどを組み合わせることで、構造変換経路、中間体、交換速度を部分的に明らかにする研究が進められている。
5.1 分子動力学計算による解析
変身タンパク質の構造変換は、通常の分子動力学計算で扱うには長い時間スケールで起こる。そのため、構造変換の研究では、計算量を削減した粗視化モデルや、構造空間を効率よく探索する特殊なサンプリング手法が用いられてきた。
代表的な手法が、デュアル盆地構造モデル(Dual-basin Structure-Based Model)である。この手法では、2つの天然構造で見られる残基間接触のみを考慮したエネルギー関数を利用することで、両構造間を行き来する経路を効率的に探索する (64)。この手法を用いた研究から、構造変換が単純な二状態遷移ではなく、中間体や律速段階を伴うことが示唆されている。XCL1では2つの天然構造で共通した部分構造を持つ中間体、RfaHではαヘリックスとβシートが部分的に形成された中間体が提案されている (65–67)。また、KaiBでは二量体解離が構造変換の主要な動力学的障壁であると提案されている (68)。
一方で、デュアル盆地構造モデルは粗視化モデルであるため、活性化障壁や交換速度を直接定量することは難しい。この限界を補うため、より詳細な分子動力学計算や状態遷移モデルを用いた解析も行われている。KaiBでは、confinement MDを用いた研究により、二量体解離が構造変換の主要な熱力学的障壁であることが提案されている (68)。また、単離したRfaH-CTDを対象とした計算では、Markov state modelによって構造変換のタイムスケールが秒オーダーと推定された (69)。
このように、分子動力学計算は、変身タンパク質の構造変換がどのような中間体や障壁を経て進むのかを推定するうえで有用である。ただし、得られる経路や中間体は、用いたモデル、初期構造、サンプリング条件に依存するため、実験で観測された速度論的挙動や中間体と照合しながら解釈することが重要である。
5.2 NMRによる解析
NMRは変身タンパク質の構造変換中に生じる中間体を検出できる代表的手法として利用されている。特に、zz-exchange、CPMG、CESTなどの測定法により、存在比が数%以下の中間体を検出できる場合がある。したがってNMRは、構造変換が単純な二状態遷移なのか、存在比の低い状態を含む多状態過程なのかを検証するうえで特に有効である。
XCL1では、ケモカイン構造と代替構造の交換が測定され、大きくほどけた中間体を経由して、数百msで構造変換することが示された (16, 17, 70)。RfaHでは、α型からβ型へ向かう過程で、NTD–CTD間相互作用が緩んだ中間体が検出されている (71)。また、KaiB単量体においても、部分的にほどけた中間体を経由して構造変換が生じること、およびKaiB固有構造からチオレドキシン様構造への変換では、プロリン異性化が律速段階であることが示された (72, 73)。これらの研究は、構造変換が単純な「一方の構造から他方の構造への直接遷移」ではなく、中間体や律速段階を含む多段階の過程であることを示している。
一方で、NMRで検出された中間体は、存在比が低く、シグナルの帰属が困難であることが多い。そのため、交換速度や存在比、二次構造の傾向は推定できても、中間体そのものの三次元構造を実験的に決定することは容易ではない。
5.3 HS-AFMによる直接観察 — シーソータンパク質
HS-AFMは、個々のタンパク質分子の動態を数十ミリ秒オーダーで連続観察できる手法である (74, 75)。そのため、十分に大きな形状変化を伴う変身タンパク質では、構造変換そのものを単一分子レベルで直接追跡できる可能性がある。
我々は、シーソータンパク質を用いて、HS-AFMによる構造変換の直接観察を行った(図4D)(51)。シーソータンパク質では、GFP型は単一ドメイン像として、DHFR型は二ドメイン像として観察され、両構造を識別できた。さらに、DHFR阻害剤メトトレキサート存在下では、時間とともにGFP型からDHFR型へ移行する過程が捉えられた。これは、構造変換そのものを単一分子レベルで時間分解観察した初の例である。
6. 変身タンパク質の進化
変身タンパク質は、タンパク質がどのように新しいフォールドを獲得してきたのか、なぜ構造変換の能力を維持してきたのかという進化学的な問いにも新しい視点を与えている。近年の研究からは、変身タンパク質には大きく2つの進化的意味があると考えられる。一つは、異なるフォールドの間をつなぐ「進化的中間体」としての役割である。もう一つは、構造変換そのものが機能として選択・維持される「進化的到達点」としての役割である。
6.1 進化的中間体としての構造変換
変身タンパク質は、異なるフォールドの間をつなぐ進化的中間体となる可能性がある。この考えを支持する例として、Orbanらによるタンパク質構造ネットワークの設計があげられる (76)。この研究では、3種類の異なる立体構造を、変異の蓄積によって相互に到達可能なネットワークとして結びつけた。この結果は、異なるフォールドが配列空間上で完全に隔たっているのではなく、連続的な変異経路によって結びつきうることを示している。
同様の考えは、天然のタンパク質の祖先配列再構成からも支持されている。八木らは、DNAPやRNAPに含まれるDPBB(double-psi β-barrel)フォールドとリボソームタンパク質に含まれるRIFTフォールドの祖先配列を再構成した (77, 78)。その過程で、自然界では現在利用されていない新規フォールドDZBBを取る祖先配列が再構成され、DPBBとDZBBの間で構造変換する変身タンパク質が見いだされた。さらに、DZBBとRIFTの間も高い配列同一性を持つ配列によって結びつけられた。これらの結果は、天然に存在するDPBBとRIFTが、DZBBと変身タンパク質を介した連続的な経路によって結びつきうることを示唆している。また、細菌の応答調節因子でも進化的な連続性が報告されており、変身タンパク質がフォールド進化の橋渡しとして機能する可能性がある (79)。
6.2 進化的に選択された構造変換
一方で、構造変換は単なる進化の通過点ではなく、それ自体が進化的に選択された可能性もある。Dishmanらは、XCL1の祖先配列を再構成し、XCL1がどのように変身性を獲得してきたのかを解析した (70)。その結果、XCL1の古い祖先はケモカイン構造のみを取っていたが、進化の過程で代替構造を持つようになったことが示唆された。さらに、祖先によっては代替構造が優勢になるなど、2つの立体構造の存在比が変化し、最終的に現代のXCL1では2つの構造がほぼ同程度に共存するようになったことを示した (70)。重要なのは、XCL1がどちらか一方の構造へ完全に固定されるのではなく、2つの構造を行き来する能力を維持してきた点である。この結果は、XCL1の構造変換能力が新しいフォールドへ移行する途中で一時的に獲得されたものではなく、2つの機能状態を実現するために進化的に維持されてきた可能性を示している。
このように、変身タンパク質は、タンパク質進化における「通過点」となりうる一方、構造変換そのものが選択・維持された「到達点」となる場合もある。変身タンパク質の進化を理解することは、新しいフォールドがどのように生まれるのか、また、2つの構造を持つことがどのように機能的利点へ結びつくのかを考えるうえで重要である。
7. まとめと今後の展望
変身タンパク質は、単一の配列が相互変換可能な2つの立体構造を取るタンパク質であり、構造に応じて機能状態が切り替わる。XCL1、RfaH、KaiBをはじめとする天然の変身タンパク質の研究に加え、人工設計、予測、構造変換、進化に関する研究が進み、変身タンパク質はアンフィンセンのドグマの単なる例外ではなく、タンパク質科学における重要な研究対象として認識されつつある。
7.1 「なぜ変身できるのか」を理解する
変身タンパク質の探索・予測手法は近年大きく進展し、既知の変身タンパク質を対象とした予測では一定の成功が得られている。一方、未知のタンパク質ファミリーから新規の変身タンパク質を網羅的に発見できる段階にはまだ至っていない。予測候補の実験的検証が進めば、変身タンパク質がタンパク質全体にどの程度存在するのかが明らかになるだろう。しかし、候補を増やすだけでは、なぜ1つの配列が2つの立体構造を取りうるのかは説明できない。
この問いに答えるには、変身タンパク質に共通する物理化学的原理を明らかにする必要がある。どのような配列上の特徴や相互作用が同程度の安定性を持つ2つの立体構造を共存させるのか。どのような条件変化が構造変換を引き起こすのか。これらが分かれば、予測精度の向上だけでなく、変身タンパク質設計の一般化にもつながる。
そのためには、変身タンパク質の探索と設計を往復する研究が重要である。探索によって、「どのタンパク質が変身するのか」を明らかにし、設計によって「どのようにすれば変身させられるのか」を検証する。この反復によって、「変身タンパク質はなぜ変身できるのか」という問いへの理解が進むだろう。
7.2 「なぜ変身するのか」を問う
もう一つの重要な問いは、変身タンパク質がなぜ2つの構造を持ち、それらを機能制御に利用するのかである。XCL1やRfaH、KaiBは、構造変換によって機能を切り替える代表例であり、シーソータンパク質はそのような性質を人工的に実現した例である。しかし、翻訳後修飾、アロステリック制御、複数のタンパク質によるフィードバックなどの機能制御機構と比べて、1つの配列が2つの構造を使い分けて機能を制御する仕組みにどのような利点があるのかは、まだ十分に理解されていない。なぜ進化は「変身」という解決策を選んだのか。天然の変身タンパク質と人工の変身タンパク質を比較することで、この問いを考えるうえで新たな視点が得られる可能性がある。
変身タンパク質研究は、「1つの配列は1つの構造を取る」という従来の見方に対し、「1つの配列が2つの構造を取り、それに応じて機能状態を切り替えうる」という新しい視点を与えてきた。変身タンパク質はなぜ変身でき、なぜ変身するのか。これらの問いを探ることは、タンパク質の構造・機能・進化を統一的に理解するための重要な課題である。
参考文献
- Anfinsen, C. B., Science, 181, 223–230 (1973)
- Dishman, A. F. & Volkman, B. F., ACS Chem. Biol., 13, 1438–1446 (2018)
- Mutter, M. & Hersperger, R., Angew. Chem. Int. Ed Engl., 29, 185–187 (1990)
- Mutter, M. et al., Angew. Chem. Int. Ed Engl., 30, 1514–1516 (1991)
- Cerpa, R. et al., Fold Des., 1, 91–101 (1996)
- Zhang, S. & Rich, A., Proc. Natl. Acad. Sci. U. S. A., 94, 23–28 (1997)
- Wang, X. et al., Angew. Chem. Int. Ed Engl., 51, 12099–12101 (2012)
- Anzini, P. et al., J. Am. Chem. Soc., 135, 10278–10281 (2013)
- Kabsch, W. & Sander, C., Proc. Natl. Acad. Sci. U. S. A., 81, 1075–1078 (1984)
- Minor, D. L. & Kim, P. S., Nature, 380, 730–734 (1996)
- Li, W. et al., Protein Sci., 24, 1075–1086 (2015)
- Kelly, J. W., Curr. Opin. Struct. Biol., 8, 101–106 (1998)
- Wright, P. E. & Dyson, H. J., J. Mol. Biol., 293, 321–331 (1999)
- Kuloglu, E. S. et al., Biochemistry, 40, 12486–12496 (2001)
- Sonay Kuloĝlu, E. et al., J. Biol. Chem., 277, 17863–17870 (2002)
- Tuinstra, R. L. et al., Proc. Natl. Acad. Sci. U. S. A., 105, 5057–5062 (2008)
- Tyler, R. C. et al., Biochemistry, 50, 7077–7079 (2011)
- Murzin, A. G., Science, 320, 1725–1726 (2008)
- Wang, B., et al., et al., mBio, 11, 1–19 (2020)
- Wang, B. & Artsimovitch, I., Front. Microbiol., 11, 619618 (2021)
- Belogurov, G. A. et al., Mol. Cell, 26, 117–129 (2007)
- Burmann, B. M. et al., Cell, 150, 291–303 (2012)
- Zuber, P. K. et al., Nat. Commun., 10, 702 (2019)
- Artsimovitch, I. & Landick, R., Cell, 109, 193–203 (2002)
- Iwase, R. et al., J. Biol. Chem., 280, 43141–43149 (2005)
- Chang, Y. G. et al., Science, 349, 324–328 (2015)
- Tseng, R. et al., Science, 355, 1174–1180 (2017)
- Snijder, J. et al., Science, 355, 1181–1184 (2017)
- Chakravarty, D. & Porter, L. L., Annu. Rev. Biophys., 55, 17–37 (2026)
- Littler, D. R. et al., J. Biol. Chem., 279, 9298–9305 (2004)
- Bullough, P. A. et al., Nature, 371, 37–43 (1994)
- Rose, G. D. & Creamer, T. P., Proteins, 19, 1–3 (1994)
- Dalal, S. et al., Nat. Struct. Biol., 4, 548–552 (1997)
- Alexander, P. A. et al., Biochemistry, 44, 14045–14054 (2005)
- Alexander, P. A. et al., Proc. Natl. Acad. Sci. U. S. A., 104, 11963–11968 (2007)
- He, Y. et al., Proc. Natl. Acad. Sci. U. S. A., 105, 14412–14417 (2008)
- Alexander, P. A. et al., Proc. Natl. Acad. Sci. U. S. A., 106, 21149–21154 (2009)
- Solomon, T. L. et al., Proc. Natl. Acad. Sci. U. S. A., 120, e2215418120 (2023)
- Radley, T. L. et al., J. Mol. Biol., 332, 529–536 (2003)
- Ha, J. H. et al., J. Mol. Biol., 357, 1058–1062 (2006)
- Cutler, T. A. & Loh, S. N., J. Mol. Biol., 371, 308–316 (2007)
- Cutler, T. A. et al., J. Mol. Biol., 386, 854–868 (2009)
- Ha, J. H. et al., J. Mol. Biol., 416, 495–502 (2012)
- Stratton, M. M. et al., ACS Chem. Biol., 3, 723–732 (2008)
- Do, K. & Boxer, S. G., J. Am. Chem. Soc., 135, 10226–10229 (2013)
- Sander, I. M. et al., J. Am. Chem. Soc., 136, 858–861 (2014)
- Hori, Y. & Sugiura, Y., J. Am. Chem. Soc., 124, 9362–9363 (2002)
- Cerasoli, E. et al., J. Am. Chem. Soc., 127, 15008–15009 (2005)
- Ambroggio, X. I. & Kuhlman, B., J. Am. Chem. Soc., 128, 1154–1161 (2006)
- Wei, K. Y. et al., Proc. Natl. Acad. Sci. U. S. A., 117, 7208–7215 (2020)
- Ikeda, T. et al., Proc. Natl. Acad. Sci. U. S. A., 122, e2412117122 (2025)
- Porter, L. L. & Looger, L. L., Proc. Natl. Acad. Sci. U. S. A., 115, 5968–5973 (2018)
- Mishra, S. et al., Protein Sci., 28, 1487–1493 (2019)
- Mishra, S. et al., Biopolymers, 112, e23471 (2021)
- Kim, A. K. et al., Biopolymers, 112, e23416 (2021)
- Jumper, J. et al., Nature, 596, 583–589 (2021)
- Chakravarty, D. & Porter, L. L., Protein Sci., 31, e4353 (2022)
- Wayment-Steele, H. K. et al., Nature, 625, 832–839 (2024)
- Chakravarty, D. et al., Nat. Commun., 15, 7296 (2024)
- Schafer, J. W. et al., Nature, 638, E8–E12 (2025)
- Lee, M. et al., Nat. Commun., 16, 5622 (2025)
- Schafer, J. W. & Porter, L. L., Nat. Commun., 14, 5478 (2023)
- Porter, L. L. et al., Nat. Commun., 13, 3802 (2022)
- Retamal-Farfán, I. et al., Biophys. Rev., 15, 787–799 (2023)
- Camilloni, C. & Sutto, L., J. Chem. Phys., 131, 245105 (2009)
- Ramírez-Sarmiento, C. A. et al., PLoS Comput. Biol., 11, e1004379 (2015)
- Gc, J. B. et al., J. Phys. Chem. B., 119, 12750–12759 (2015)
- Rivera, M. et al., Biophys. J., 121, 943–955 (2022)
- Li, S. et al., J. Chem. Theory Comput., 10, 2255–2264 (2014)
- Dishman, A. F. et al., Science, 371, 86–90 (2021)
- Cai, M. et al., Biochemistry, 63, 2030–2039 (2024)
- Zhang, N. et al., Proc. Natl. Acad. Sci. U. S. A., 121, e2412327121 (2024)
- Wayment-Steele, H. K. et al., Proc. Natl. Acad. Sci. U. S. A., 121, e2412293121 (2024)
- Uchihashi, T. et al., Nat. Protoc., 7, 1193–1206 (2012)
- Ando, T. et al., Chem. Rev., 114, 3120–3188 (2014)
- Ruan, B. et al., Nat. Commun., 14, 431 (2023)
- Yagi, S. et al., J. Am. Chem. Soc., 143, 15998–16006 (2021)
- Yagi, S. & Tagami, S., Nat. Commun., 15, 5938 (2024)
- Chakravarty, D. et al., Nat. Commun., 14, 3177 (2023)
-
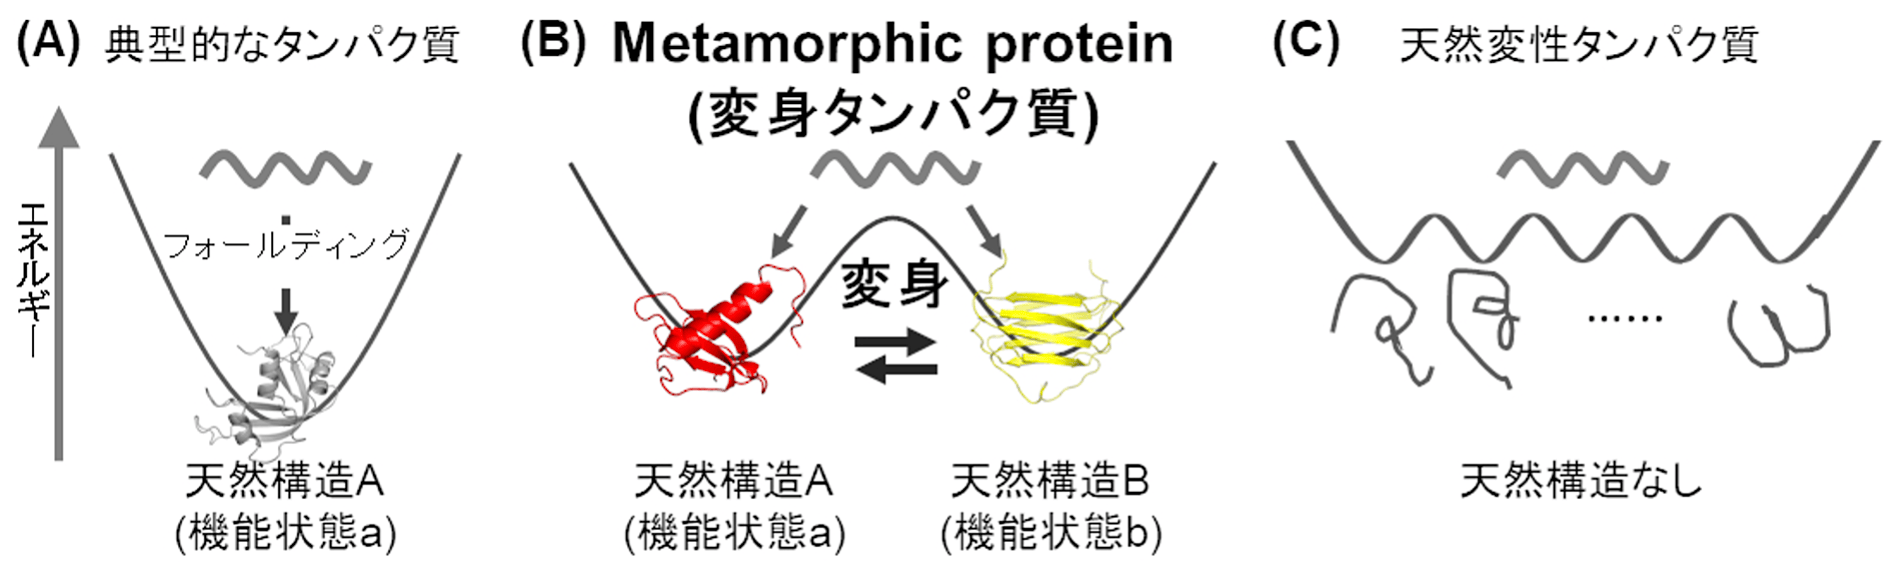
図1:タンパク質クラスごとのエネルギーランドスケープ. (A)典型的なタンパク質:1つの安定した天然構造を持つ。(B)変身タンパク質:2つの安定した天然構造を持つ。(C)天然変性タンパク質:特定の天然構造を持たない。 -
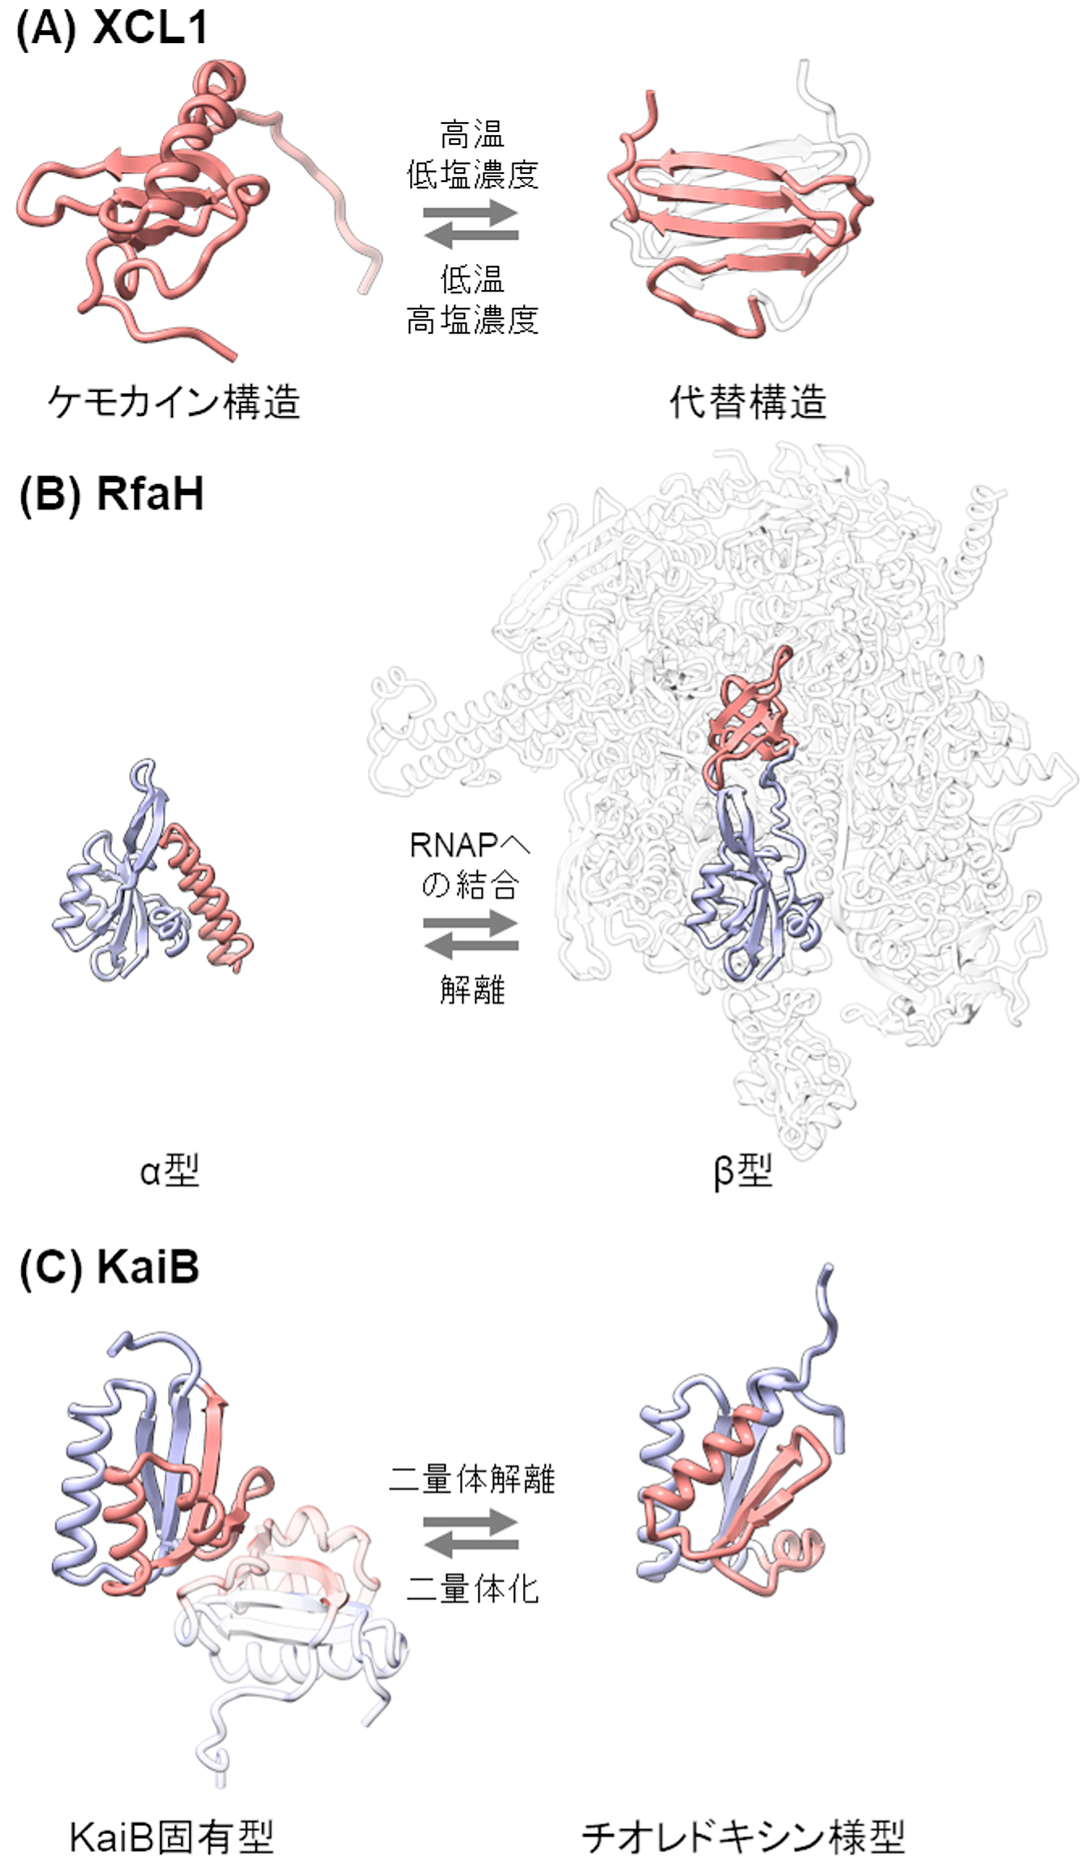
図2:代表的な変身タンパク質の2つの天然構造. 立体構造が変化する領域を赤、構造が変化しない領域を青で描画した。(A)XCL1(ケモカイン構造:1J9O ↔ 代替構造:2JP1)。(B)RfaH(α型:2OUG ↔ β型:6C6S)、β型では相互作用するRNAP、DNA、mRNAを灰色で示した。(C)KaiB(KaiB固有型:2QKE ↔ チオレドキシン様型:5JYT)、KaiB固有型では、会合するサブユニットを示した。 -
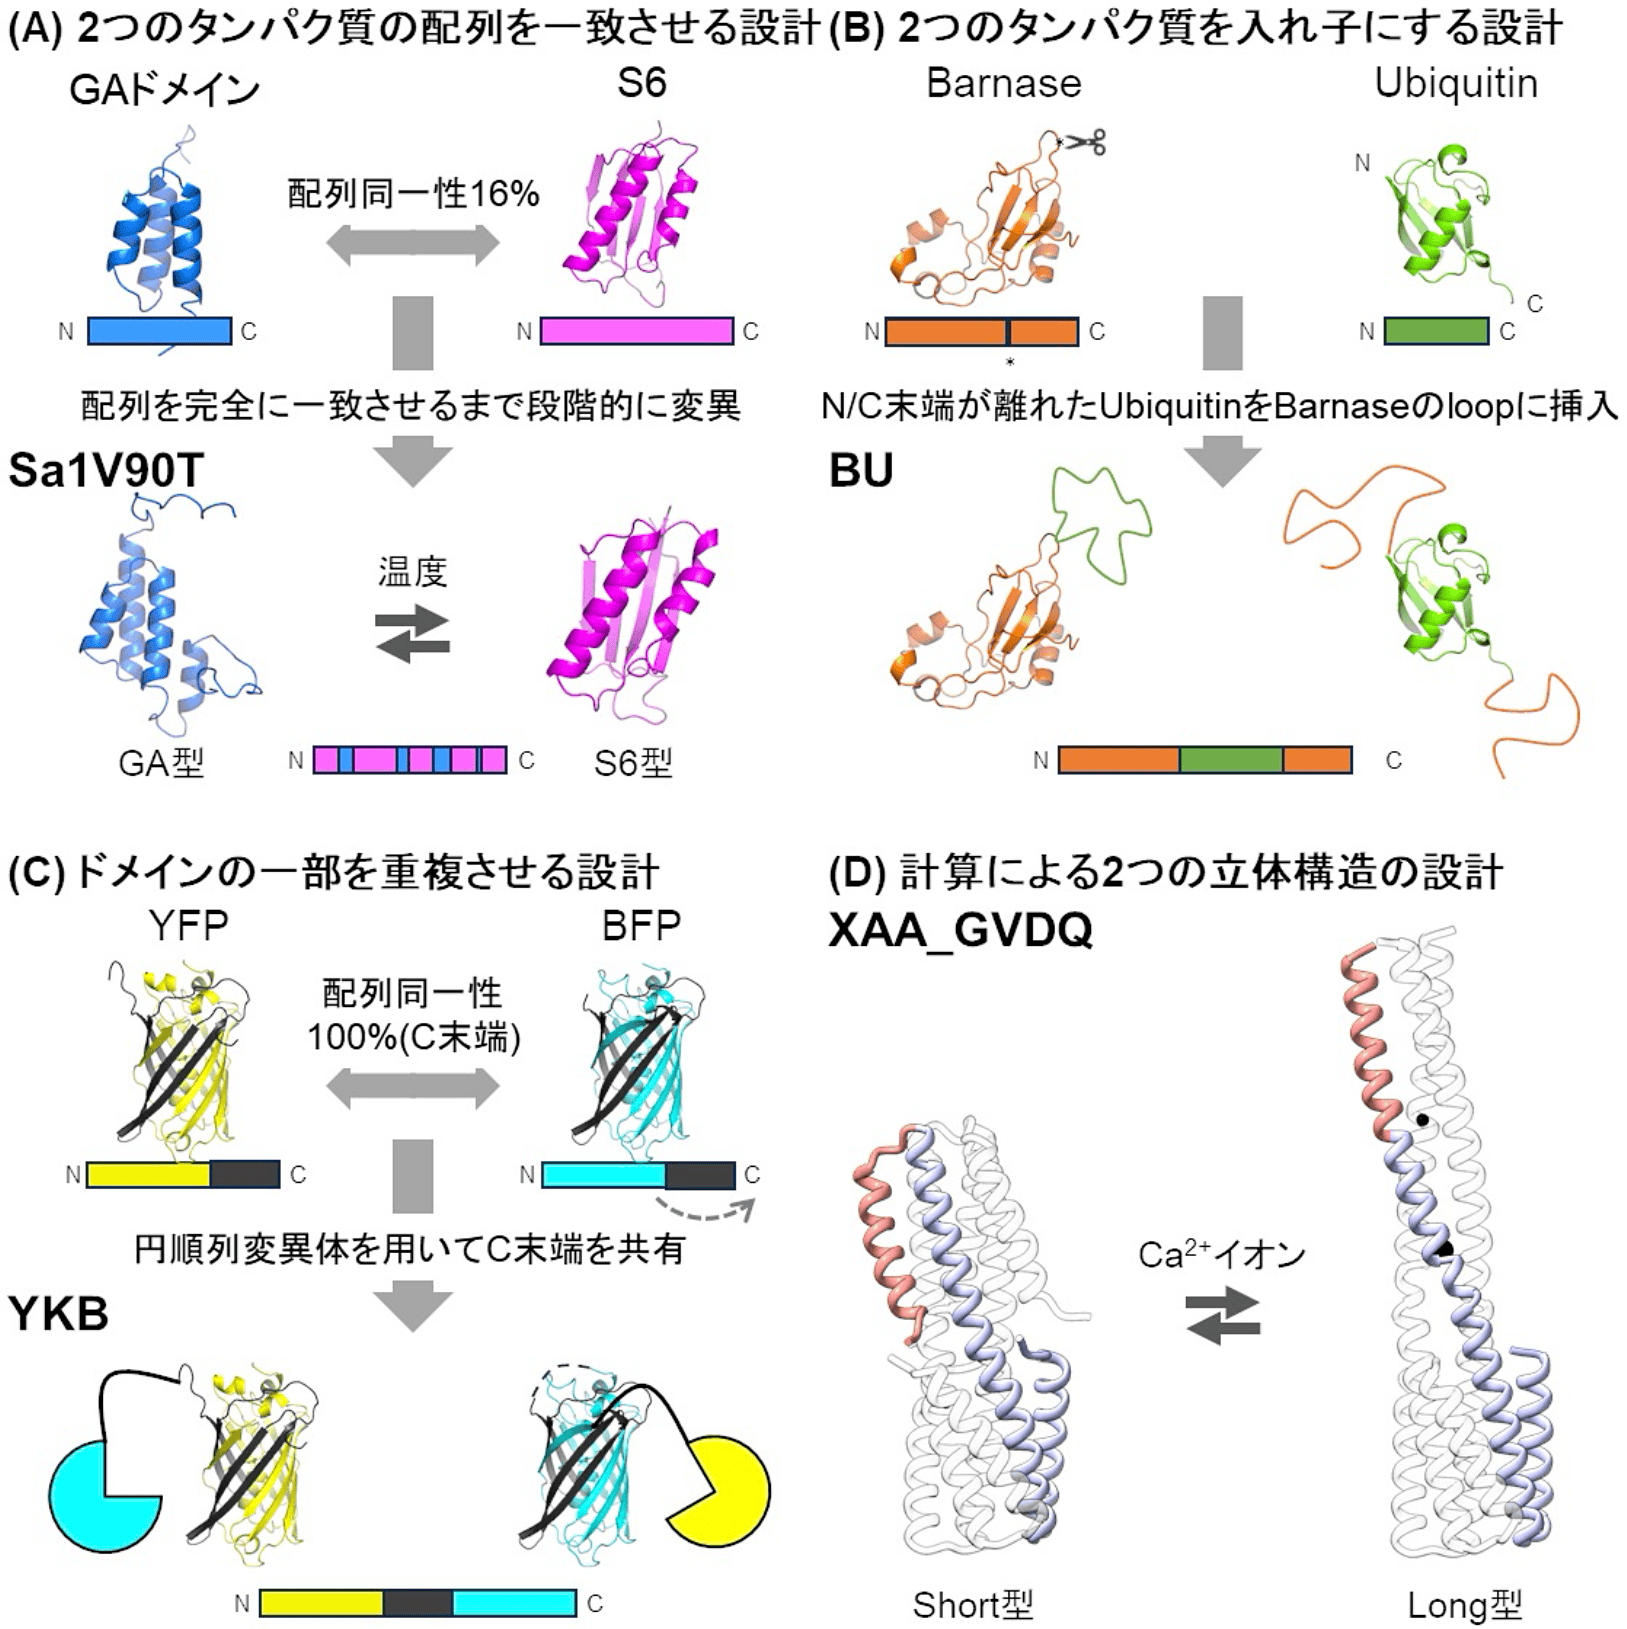
図3:変身タンパク質の設計(A)2つのタンパク質の配列を一致させる設計、(B)2つのタンパク質を入れ子にする設計、(C)ドメインの一部を重複させる設計、(D)計算による2つの立体構造の設計。 -
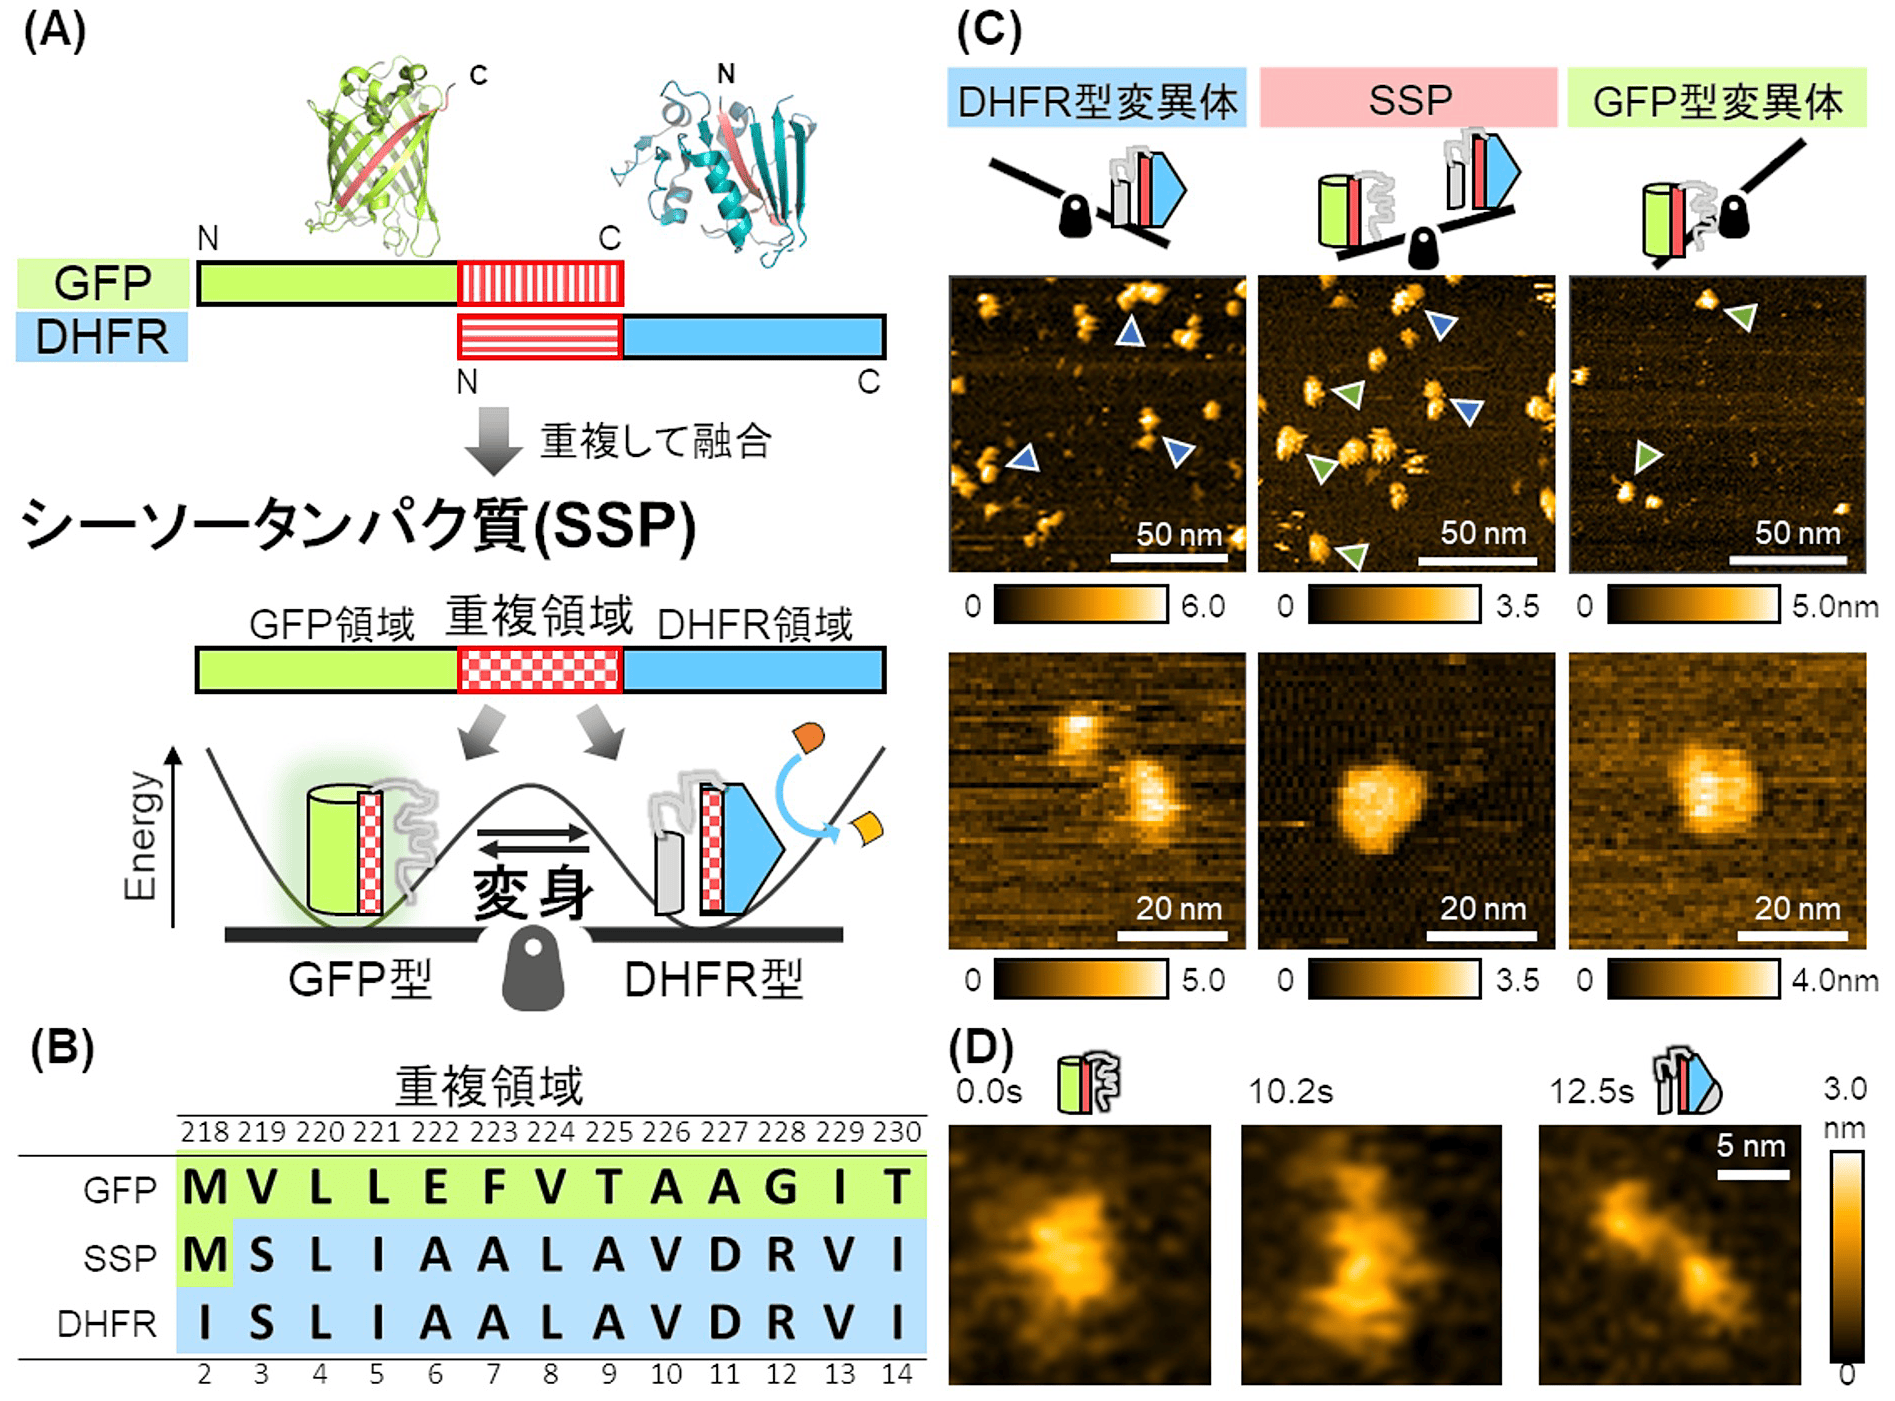
図4:シーソータンパク質(Seesaw protein, SSP)の設計
(A)相互に変換可能なGFP型とDHFR型を持つシーソータンパク質の設計。(B)重複領域のアミノ酸配列。(C)高速原子間力顕微鏡によるシーソータンパク質の観察。(D)DHFR阻害剤添加時のシーソータンパク質のGFP型からDHFR型への変身。